Oxidação, desamidação e agregação: as vias de degradação de um peptídeo
Três rotas químicas explicam a maioria das perdas de qualidade. O que cada uma faz, o que a acelera e os sinais que ela deixa.
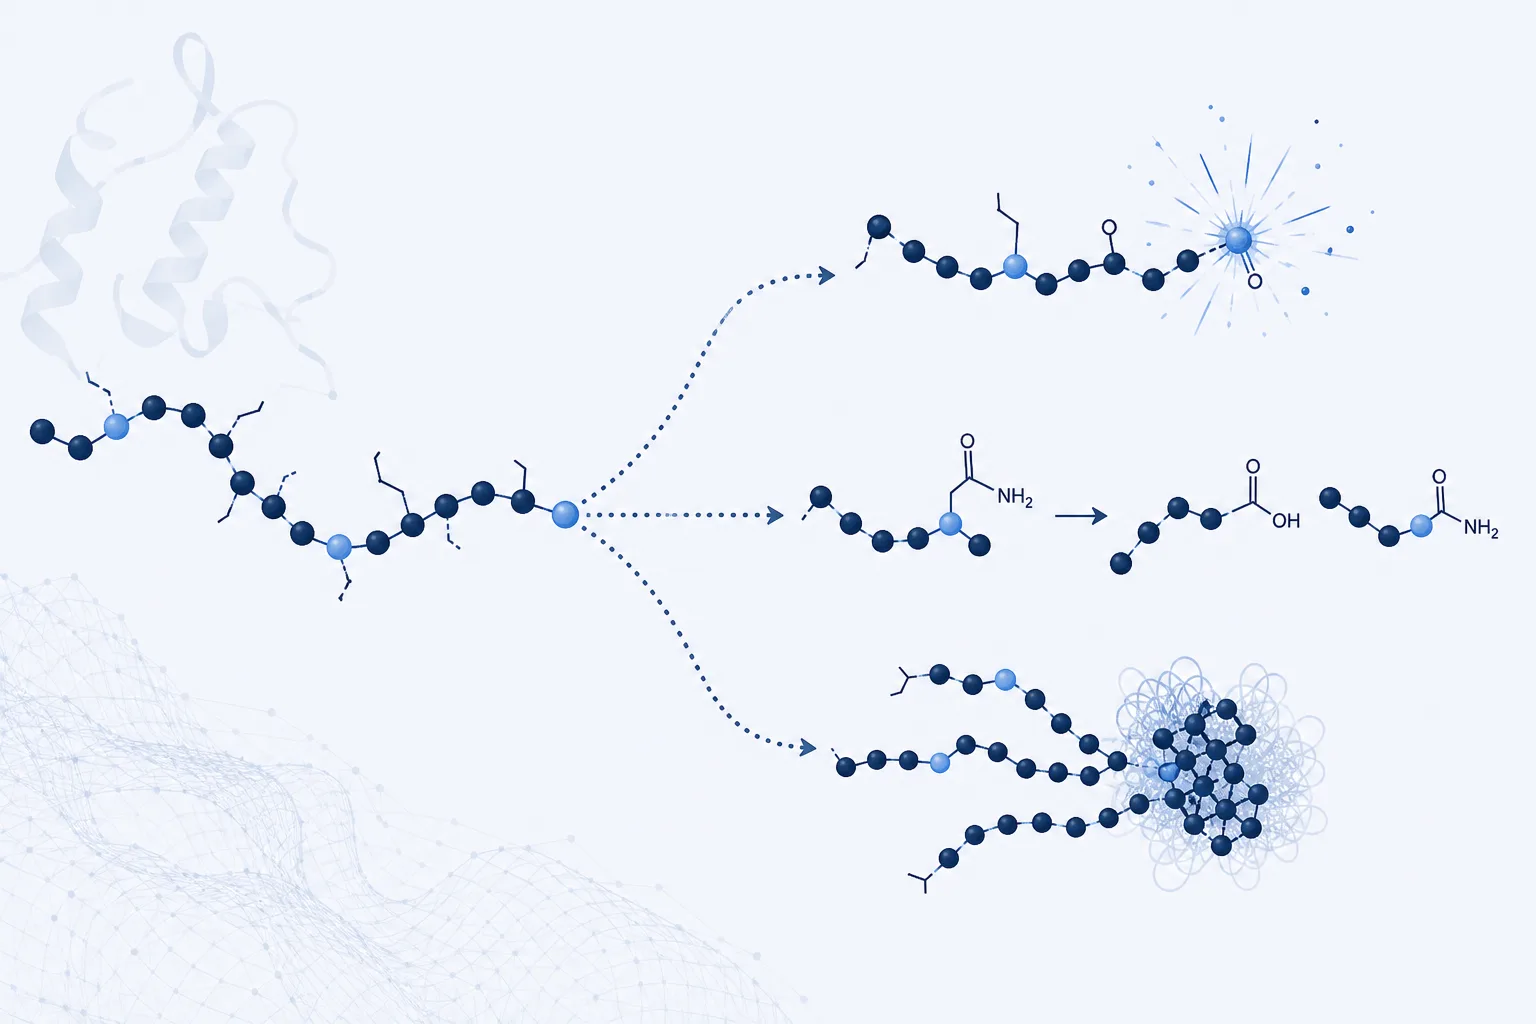
Um peptídeo não estraga de forma genérica: ele segue rotas químicas conhecidas, e três delas respondem pela maior parte da perda de qualidade no armazenamento. A oxidação ataca resíduos específicos, como a metionina; a desamidação reescreve asparaginas e glutaminas; e a agregação junta moléculas em partículas que não voltam atrás. Calor, luz, oxigênio e água aceleram as três — por isso controlar o armazenamento é, no fundo, controlar a velocidade dessas reações.
Conhecer as vias não é erudição: é o que permite ler um frasco com atenção — a cor, a turvação, o aspecto do bolo — e entender o que o laudo de HPLC mostra quando um lote envelhece. Ao final, uma tabela resume cada via, seus gatilhos e o sinal que ela costuma deixar.
Oxidação: o oxigênio trabalhando devagar
A oxidação é a reação da molécula com o oxigênio do ar ou com peróxidos presentes em solventes. O alvo mais comum é a metionina, cujo átomo de enxofre ganha um oxigênio e vira metionina sulfóxido: uma alteração pequena na fórmula, dezesseis daltons a mais na massa, suficiente para mudar o comportamento do peptídeo [1]. Cisteínas livres oxidam com facilidade e formam pontes dissulfeto em posições erradas; triptofanos e histidinas também estão na lista de alvos.
Os aceleradores são conhecidos: luz, traços de metais, o ar dentro do frasco e a temperatura alta. Os sinais visíveis, quando existem, são sutis — um leve amarelamento do pó ou da solução — e na maior parte das vezes a oxidação só se revela no cromatograma, como picos novos ao lado do pico principal. É a via que mais justifica o frasco âmbar, o armário escuro e a tampa bem fechada. A prática de minimizar o espaço de ar acima do líquido nos frascos nasce da mesma lógica.
Desamidação: a asparagina que vira outra coisa
A desamidação é a perda do grupo amida da cadeia lateral da asparagina ou da glutamina. A asparagina vira ácido aspártico ou isoaspártico, passando por um intermediário em anel chamado succinimida; a mudança líquida é a entrada de uma molécula de água e a saída de amônia, o que soma cerca de um dalton na massa e altera a carga do peptídeo [2]. Parece pouco — para um peptídeo curto, trocar um resíduo muda a molécula inteira.
A velocidade depende da sequência e das condições. Asparagina seguida de glicina é o ponto mais frágil, e pH neutro ou alcalino, combinado com calor, acelera a reação; em condições fisiológicas, esse ponto pode ter meia-vida de cerca de um dia [2]. Numa solução guardada na prateleira, a mesma química continua acontecendo, só que mais devagar. É uma via invisível: não muda a cor, não turva o líquido — só aparece na análise.
Agregação: quando as moléculas se juntam
A agregação é a via mais visível das três. Uma molécula parcialmente desdobrada — por calor, congelamento, agitação ou simplesmente tempo — expõe regiões hidrofóbicas que a estrutura original escondia. Essas regiões se reconhecem entre moléculas e se unem, primeiro em agregados pequenos e solúveis, depois em partículas maiores [3]. A agitação vigorosa cria ainda uma interface entre ar e líquido, outro ponto clássico de desdobramento — motivo pelo qual a manipulação de soluções pede movimentos suaves. O resultado prático é a solução que fica turva, opalescente ou com flocos.
Existe a agregação física, por atração entre superfícies, e a agregação química, quando pontes dissulfeto ou outras ligações covalentes passam a unir as moléculas de verdade. A primeira às vezes é reversível; a segunda, quase nunca. E a agregação tem memória: os agregados já formados funcionam como semente para novos, motivo pelo qual uma solução que turvou uma vez tende a piorar depressa [3].
Por que uns envelhecem mais rápido que outros
A velocidade de degradação não é uma constante do frasco: está escrita na sequência. Cada cadeia carrega sua própria lista de pontos frágeis — metioninas e cisteínas convidam a oxidação, o par asparagina-glicina convida a desamidação, trechos ricos em resíduos hidrofóbicos convidam a agregação [1][2]. Dois peptídeos guardados lado a lado, na mesma prateleira e na mesma temperatura, envelhecem em ritmos diferentes porque a matéria-prima da degradação é a própria molécula.
O tamanho da cadeia amplifica a diferença: num peptídeo de dez resíduos, um único aminoácido modificado é dez por cento da molécula; numa proteína longa, o mesmo evento se dilui. E a formulação pesa — o contra-íon do sal, os excipientes do bolo e, sobretudo, o teor de água residual que restou da secagem definem o ponto de partida de cada via. É por isso que dois lotes do mesmo peptídeo, de fabricantes diferentes, podem envelhecer de modos visivelmente distintos.
A consequência prática é a humildade diante de números genéricos: uma afirmação de prazo vale para a molécula e a formulação em que foi medida. Um "estável por meses" dito de um peptídeo não se transfere automaticamente a outro — nem ao mesmo peptídeo em uma formulação diferente. Estabilidade é sempre propriedade do produto, não da família.
Outras vias que aparecem no laudo
Duas rotas completam o mapa. A hidrólise quebra a própria ligação peptídica, a espinha dorsal da molécula, e é favorecida por água, pH extremo e calor — é a razão química pela qual a liofilização existe. A racemização, por sua vez, inverte a configuração espacial de um aminoácido e cria uma imagem-espelho da molécula original, que os métodos de rotina quase não distinguem. Nenhuma das duas dá sinais visuais; as duas engordam a lista de impurezas de um lote envelhecido. É por isso que laudos completos listam as impurezas relacionadas e não apenas a pureza do pico principal: o número sozinho não diz por qual via o lote está envelhecendo.
A racemização merece nota à parte. Quase todos os aminoácidos existem em duas formas espelhadas, e as cadeias naturais usam apenas uma delas; a conversão lenta para a forma espelho cria um peptídeo com exatamente a mesma massa e a mesma composição. Esse gêmeo é invisível para a espectrometria de massas simples e passa despercebido em boa parte dos métodos cromatográficos de rotina — detectá-lo exige colunas quirais específicas, raras em laudos comerciais. É a via mais silenciosa de todas: nem sinal visual, nem sinal analítico fácil.
O que acelera cada via — e o que isso muda na bancada
Os gatilhos se repetem entre as vias, e é essa repetição que torna o armazenamento tão decisivo. Estudos de estabilidade existem exatamente para medir essas rotas sob condições controladas de temperatura e umidade, e é deles que saem as faixas de conservação impressas nos rótulos [4]. A umidade merece destaque à parte: o bolo liofilizado é higroscópico e puxa água do ar, reabrindo dentro do frasco o caminho que a secagem havia fechado [5].
| Via | Alvo principal | O que acelera | Sinal típico |
|---|---|---|---|
| Oxidação | Metionina, cisteína, triptofano | Luz, ar, metais, calor | Amarelamento; picos novos no cromatograma |
| Desamidação | Asparagina e glutamina | pH neutro ou alcalino, calor | Nenhum sinal visual; mudam massa e carga |
| Agregação | Regiões hidrofóbicas expostas | Congelamento, agitação, calor, tempo | Turvação, opalescência, flocos |
| Hidrólise | A ligação peptídica | Água, pH extremo, calor | Perda de teor; fragmentos no laudo |
Os sinais: quando suspeitar do frasco
Nenhum sinal visual substitui uma análise, mas alguns pedem atenção imediata:
- Solução turva, opalescente ou com partículas em suspensão.
- Pó ou bolo com amarelamento ou mudança de cor em relação ao padrão do lote.
- Bolo colapsado, encolhido, úmido ou colado nas paredes do vidro.
- Qualquer alteração de cheiro ou de comportamento ao ser manipulado.
Diante desses sinais, o caminho honesto é documentar o estado do frasco, confrontar com o laudo do lote e, se a dúvida persistir, submeter uma amostra a uma contra-análise em laboratório independente em vez de simplesmente assumir que está tudo bem.
Referências
- Methionine oxidationWikipedia
- DeamidationWikipedia
- Protein aggregationWikipedia
- Diretrizes de estabilidade da ICH (série Q1A–Q1E e Q5C)International Council for Harmonisation
- HygroscopyWikipedia