A ligação peptídica: a química que mantém aminoácidos juntos
Uma ligação amida formada com saída de água — simples de desenhar, decisiva para a estabilidade do produto.
A ligação peptídica é a ligação covalente que une dois aminoácidos — e, por tabela, todo peptídeo e toda proteína que existem. Quimicamente, ela é uma ligação amida: o grupo carboxila de um aminoácido reage com o grupo amino do seguinte, e uma molécula de água sai de cena no processo [1]. Repita essa reação dezenas ou centenas de vezes e você tem uma cadeia polipeptídica: uma sequência de resíduos pendurados nesse mesmo elo, um após o outro.
Simples de desenhar no papel, a ligação peptídica explica boa parte do que acontece com o produto dentro do frasco: por que o pó liofilizado dura mais do que a solução, por que calor e umidade encurtam a validade e por que o laudo de pureza mede, no fundo, a integridade dessas ligações. Este guia percorre a reação que forma o elo, a estrutura que o torna rígido e a reação inversa que o desfaz.
A reação de condensação, passo a passo
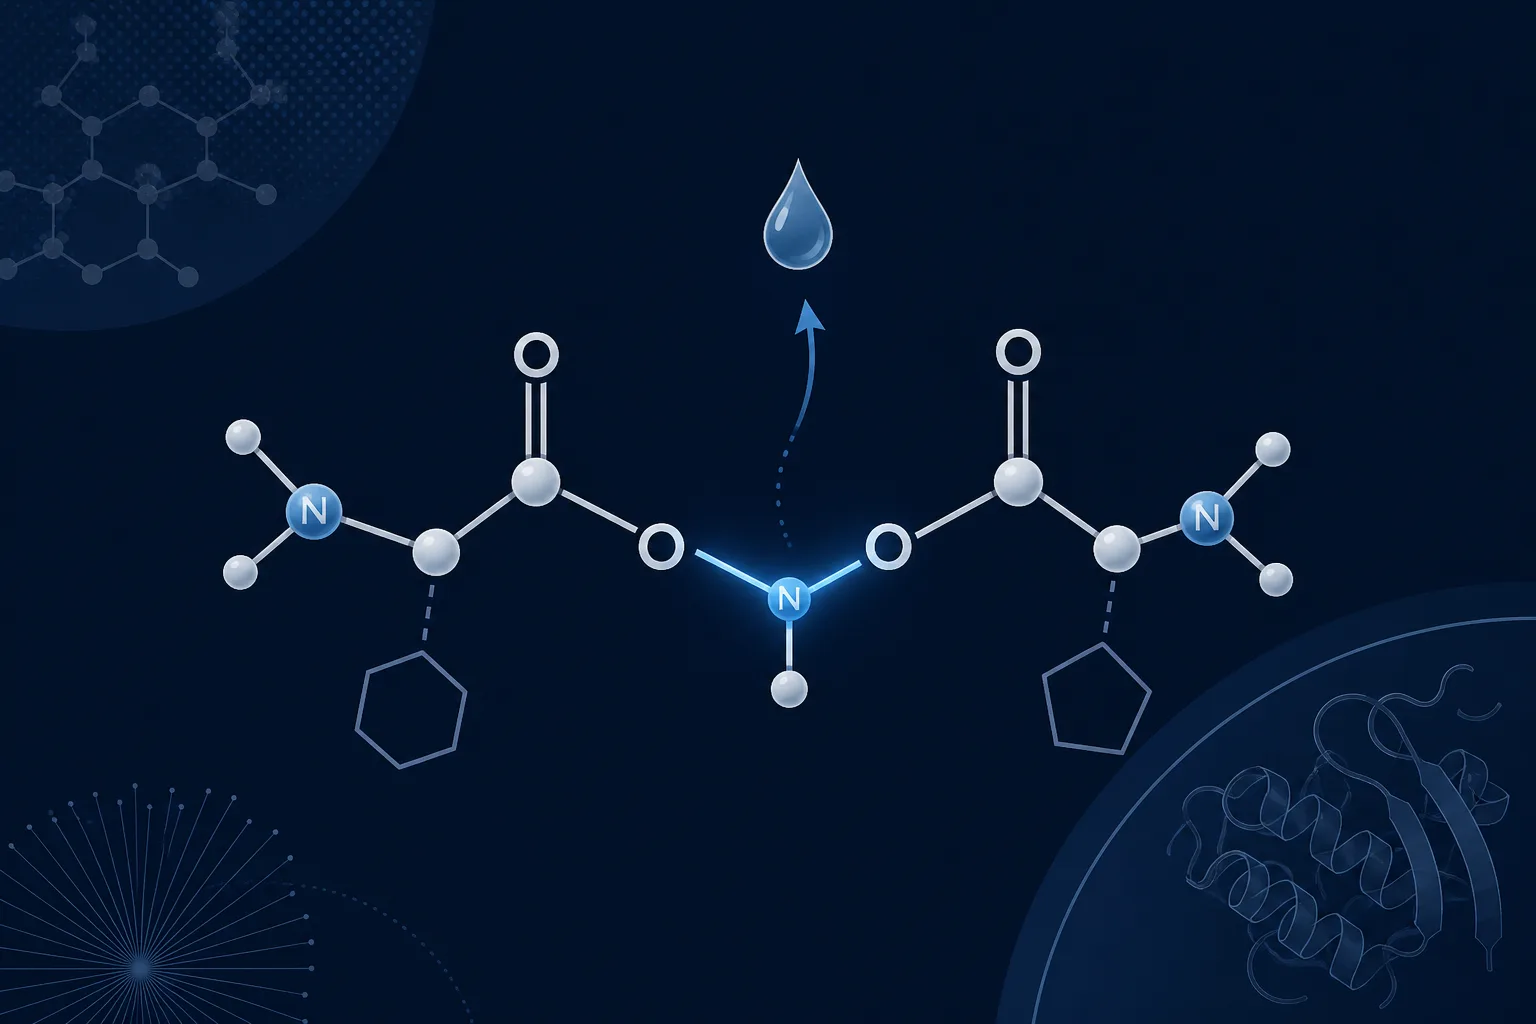
Todo aminoácido tem duas pontas reativas: um grupo amino de um lado e um grupo carboxila do outro. Quando a carboxila de um aminoácido encontra o grupo amino de outro nas condições certas, os dois grupos se fundem em uma ligação amida — carbono, oxigênio, nitrogênio e hidrogênio rearranjados — e os átomos que sobram formam uma molécula de água [2]. Por expulsar água, a reação pertence à família das condensações [2].
Dentro das células, quem executa essa reação é o ribossomo, montando cadeias conforme o molde do RNA mensageiro. No laboratório, a química é a mesma, mas o maquinário muda: reagentes de acoplamento ativam a carboxila de um aminoácido por vez, na rotina da síntese em fase sólida. Nos dois casos, o resultado é idêntico — uma ligação peptídica nova a cada etapa de acoplamento, e uma cadeia que cresce sempre na mesma direção.
Um detalhe dessa montagem define tudo o que vem depois: a direção. Como uma ponta do elo é sempre uma carboxila e a outra é sempre um grupo amino, a cadeia ganha duas extremidades diferentes — a extremidade amino, chamada de N-terminal, e a extremidade carboxila, chamada de C-terminal. Por convenção, toda sequência de peptídeo se escreve e se lê do N-terminal para o C-terminal, como uma frase que só faz sentido em uma direção [1].
Rígida e plana: o segredo estrutural do elo
A ligação peptídica tem um comportamento que surpreende quem espera uma ligação simples comum: ela é parcialmente dupla. O par de elétrons do nitrogênio se deslocaliza em direção ao oxigênio da carbonila, criando uma ressonância que dá à ligação carbono-nitrogênio um caráter de dupla ligação parcial [1][3]. A consequência é geométrica: a rotação em torno do elo fica travada, e os seis átomos do grupo amida passam a ocupar o mesmo plano [3].
Esse detalhe estrutural parece abstrato, mas é dele que nasce a arquitetura das cadeias. Com cada ligação congelada em um plano — quase sempre na geometria trans —, a cadeia só pode girar em torno dos carbonos centrais dos aminoácidos. Hélices e folhas, os formatos clássicos das proteínas, são as soluções estáveis que sobram quando a cadeia dobra respeitando essa restrição [1].
Os outros elos que seguram a cadeia
A ligação peptídica monta o esqueleto, mas não trabalha sozinha. Pontes de dissulfeto — ligações entre átomos de enxofre de resíduos de cisteína — costuram trechos distantes da cadeia e funcionam como grampos estruturais; a insulina, por exemplo, só mantém suas duas cadeias unidas graças a elas [1]. Ao lado delas, interações mais fracas entre as cadeias laterais — pontes de hidrogênio, encontros de regiões carregadas, a fuga das partes apolares da água — fecham o dobramento tridimensional.
A hierarquia importa na prática. As interações fracas se desfazem com facilidade, e é por isso que uma proteína perde a forma com calor moderado. As pontes de dissulfeto aguentam mais. E a ligação peptídica é a mais teimosa das três — derrubá-la exige água, tempo e condições que a favoreçam, o que nos leva de volta à hidrólise.
A reação inversa: a hidrólise
A mesma água que sai na formação pode voltar para desfazer o trabalho. Na hidrólise, uma molécula de água ataca a ligação amida e a parte em duas, devolvendo o grupo amino a um lado e a carboxila ao outro [4]. É a reação que as proteases executam na digestão, quebrando as proteínas dos alimentos em fragmentos absorvíveis — e é a mesma química que, em ritmo lento, ameaça qualquer peptídeo guardado.
Os catalisadores mais eficientes dessa quebra são as enzimas. Cada protease reconhece pontos específicos da cadeia — uma corta depois de resíduos carregados, outra ao lado de aromáticos — e o conjunto delas desmonta qualquer proteína ingerida em fração de horas [4]. No frasco de reagente não há enzimas trabalhando, mas a lição química permanece: dadas água, energia e tempo suficientes, a ligação amida cede.
Em condições neutras e frias, a hidrólise é lenta; mas ela é cumulativa e ganha velocidade com alguns empurrões bem conhecidos [4]:
- calor, que acelera praticamente toda reação química;
- pH muito ácido ou muito básico, que catalisa o ataque da água ao elo [4];
- a própria presença de água — sem ela, a reação simplesmente não tem reagente [4];
- tempo, porque cada dia em solução soma novas quebras à cadeia.
O que a ligação explica sobre o produto no frasco
É aqui que a química encontra a logística. O peptídeo de pesquisa é fornecido liofilizado — seco por sublimação — porque remover a água é remover o reagente da hidrólise: sem ela, a principal rota de quebra quase para, e o frasco selado tolera meses de geladeira. Uma vez em solução, o relógio volta a andar, e é por isso que soluções têm vida útil curta mesmo refrigeradas. A validade impressa no rótulo pressupõe exatamente essas condições.
O laudo de laboratório conta a mesma história por outro ângulo. Quando o HPLC mede pureza, ele separa a cadeia intacta dos fragmentos que já perderam pedaços — e cada pedaço perdido começou com uma ligação peptídica rompida. Um percentual de pureza alto é, na linguagem da química, a confirmação de que a esmagadora maioria das ligações continua exatamente onde a síntese as colocou.
A umidade é a vilã silenciosa dessa história. O bolo liofilizado é poroso e higroscópico: deixado aberto, ele puxa água do ar e recria, dentro do próprio frasco, as condições da hidrólise. É por isso que a disciplina de bancada — fechar bem o frasco, respeitar a geladeira, anotar datas — não é burocracia: é controle direto sobre a reação que desfaz a ligação mais importante da molécula.
Referências
- Peptide bondWikipedia
- Condensation reactionWikipedia
- AmideWikipedia
- HydrolysisWikipedia